НашНатуралист
Исследуй природу, фиксируй наблюдения и делись находками прямо с телефона
Скачать для Android
Тетеревятник
Текст статьи
Я́стреб-тетеревя́тник (лат. Astur gentilis) — вид среднекрупных хищных птиц из семейства ястребиных (Accipitridae), к которому также относятся другие дневные хищники, такие как орлы, канюки и луни. Ранее вид относили к роду Accipiter. Ястреб-тетеревятник широко распространён в умеренных районах Евразии. За исключением небольшой части южной Азии, это единственный вид «тетеревятников» в своём ареале, поэтому часто официально и неофициально называется просто тетеревятником. В основном оседлый, но птицы из более холодных регионов мигрируют на юг на зимовку. С 2023 года тетеревятники, обитающие в Северной Америке, больше не считаются конспецифичными с евразийским видом и выделены в самостоятельный вид — Американский тетеревятник (лат. Astur atricapillus).
Систематика
Евразийский тетеревятник был формально описан в 1758 году шведским натуралистом Карлом Линнеем в десятом издании его Systema Naturae под биномиальным названием Falco gentilis. Ранее вид относили к роду Accipiter. Молекулярно-филогенетические исследования показали, что Accipiter является полифилетическим родом, в результате чего был выделен ряд монофилетических родов. Род Astur был восстановлен для размещения евразийского тетеревятника и ещё восьми видов, ранее входивших в Accipiter. Род Astur был впервые введён в 1799 году французским натуралистом Бернаром Жерменом де Ласепедом. Научное название происходит от латинского: astur — «ястреб», gentilis — «благородный» или «мягкий», поскольку в Средние века только знать имела право держать тетеревятников для соколиной охоты.
Молекулярно-генетическое исследование 2019 года неожиданно показало, что евразийский и американский тетеревятник не являются сестринскими видами. Ближайшим родственником евразийского тетеревятника оказался тетеревятник Мейера (Astur meyerianus) из Юго-Восточной Азии. Род Astur объединяет дневных хищников, отличающихся ловкостью, относительно небольшими размерами и лесным образом жизни. Эта группа существует, возможно, десятки миллионов лет, что связано с адаптацией к большому количеству мелких птиц, заселивших леса в последние геологические эпохи. Луни — единственная группа современных дневных хищников, относительно близкая к этому роду, тогда как канюки, старосветские коршуны, морские орлы и поющие тетеревятники гораздо более отдалённые родственники, а остальные современные ястребиные не имеют прямого родства.
Внутри рода Astur евразийский тетеревятник, по-видимому, входит в супервид с другими крупными тетеревятниками из разных частей света. Американский тетеревятник, обитающий в Северной Америке, ранее считался конспецифичным с евразийским и вместе с ним образовывал комплекс видов «северный тетеревятник». Тетеревятник Мейера, встречающийся в Южном Тихом океане, вероятно, является ближайшим современным родственником евразийского тетеревятника; разрыв в их ареалах объясняется аналогичными случаями у других палеарктических хищников, таких как орёл Бонелли (Aquila fasciata) и змееяд (Circaetus gallicus), которые имеют изолированные популяции на тропических островах и, вероятно, были частью той же радиации, что и тетеревятник Мейера. Более древняя радиация этой группы, по-видимому, произошла в Африке, где она привела к появлению тетеревятника Хенста на Мадагаскаре и чёрного ястреба (Astur melanoleucus) на материке. Хотя тетеревятник Хенста внешне напоминает северных тетеревятников, чёрный ястреб внешне похож на перепелятника из-за более длинных и тонких ног, но по размеру и окраске (особенно у молодых) ближе к тетеревятнику.
Вне предполагаемого супервида, род Erythrotriorchis может быть частью австралазийской радиации базальных тетеревятников, что подтверждается их морфологическим сходством с северными тетеревятниками.
Термин goshawk происходит от древнеанглийского gōsheafoc — «гусиный ястреб».
Подвиды
Северный тетеревятник, по-видимому, дивергировал в северной и центральной Евразии, распространившись на запад в Европу и позднее на восток в Северную Америку через Берингийский перешеек. Окаменелости свидетельствуют о присутствии тетеревятников в Калифорнии уже в плейстоцене. Два не исключающих друг друга процесса могли привести к заметному разнообразию окраски и размеров северных тетеревятников: изоляция в прошлом позволила сформироваться различным морфам, приспособленным к условиям разных географических районов, а затем смешение этих генотипов привело к клинам, либо современные селективные давления вызвали разнообразие оттенков и рисунков. В результате высокой изменчивости индивидуальных тетеревятников по признакам оперения и типичных тенденций клинального и размерного разнообразия, соответствующих правилу Бергмана и правилу Глогера, в прошлом было описано чрезмерное количество подвидов северного тетеревятника. Только в Европе (включая европейскую Россию) между 1758 и 1990 годами было описано 12 подвидов. Современные авторитеты обычно признают 9–10 подвидов северного тетеревятника по всему ареалу.
- A. g. gentilis (Linnaeus, 1758) — номинативный подвид, распространённый по большей части современного европейского ареала вида, за исключением северной Фенноскандии, северо-западной России и, возможно, некоторых средиземноморских островов. Вне Европы ареал простирается на юг до северо-западной Африки (Алжир, Тунис, Марокко) и на восток в Евразии до Урала, Кавказа и Малой Азии. Обычно крупный подвид с выраженным половым диморфизмом. Длина крыла у самцов 300–342 мм, у самок 336–385 мм. Масса тела варьирует от 517 до 1110 г у самцов и от 820 до 2200 г у самок. В отдельных случаях самые крупные взрослые самки могут быть в 4 раза тяжелее самых мелких взрослых самцов, хотя это исключение. Самые высокие средние массы отмечены в центральной Фенноскандии: 865 г у самцов и 1414 г у самок. Самые низкие — в Испании: медиана 690 г у самцов и 1050 г у самок. Окраска спины и кроющих крыла тёмно-сизо-коричневая, голова чёрно-коричневая, бровь тонкая, низ тела кремовый с густыми тёмными поперечными полосами. В южной части ареала бровь тоньше, а полосы на брюхе шире и гуще. Изабеллиновая морфа известна в Центральной и Восточной Европе, но встречается редко.
- A. g. arrigonii Kleinschmidt, 1903 — островной подвид, обитающий на Сардинии и Корсике. Мельче и с более слабыми лапами, чем номинативный подвид. Длина крыла у самцов 293–308 мм, у самок 335–347 мм. Окраска сверху более чёрно-коричневая, голова почти полностью чёрная, низ почти белый с густыми чёрными полосами и заметными чёрными штрихами. Не всеми авторами признаётся валидным.
- A. g. buteoides Menzbier, 1882 — характерен для северных частей западноевразийского ареала, от северной Фенноскандии до западной Сибири вплоть до реки Лена. На востоке многие птицы зимуют в Центральной Азии. Крупный подвид, длина крыла у самцов 308–345 мм, у самок 340–388 мм. Масса тела у самцов 870–1170 г (в среднем 1016 г), у самок 1190–1850 г (в среднем 1355 г). Окраска светлее, чем у номинативного подвида: сверху голубовато-серая, корона тёмно-серая, широкая бровь, низ белый с тонкими чёрно-коричневыми полосами. В западной Сибири около 10% особей почти полностью белые.
- A. g. albidus Menzbier, 1882 — обитает на северо-востоке Сибири и Камчатки. Многие зимуют в Забайкалье, северной Монголии и Уссурийском крае. Крупнейший подвид по средним размерам, хотя размеры перекрываются с A. g. buteoides и крупными популяциями A. g. gentilis. Длина крыла у самцов 316–346 мм, у самок 370–388 мм. Масса самцов 894–1200 г, самок 1300–1750 г. Самый светлый подвид: многие особи светло-серые сверху с большим количеством белого на голове и очень редкими полосами снизу; около половины особей почти полностью белые.
- A. g. schvedowi Menzbier, 1882 — от Урала до Амурской области, Уссурийского края, Маньчжурии, центрального Китая, а также на Сахалине и Курильских островах. Мельче других материковых подвидов, с самым выраженным половым диморфизмом, возможно, как адаптация к разделению добычи в разреженных лесах степей. Длина крыла у самцов 298–323 мм, у самок 330–362 мм. Масса 15 самцов 357–600 г (в среднем 501 г), две самки — 1000 и 1170 г. Окраска сланцево-серая сверху, голова чёрная, низ густо покрыт тонкими коричневыми полосами.
- A. g. fujiyamae Swann & Hartert, 1923 — встречается в Японии, от острова Хоккайдо до северной части Хонсю. Мелкий подвид, возможно, мельче A. g. schvedowi, но менее диморфен и в среднем тяжелее. Длина крыла у самцов 286–300 мм, у самок 302–350 мм. Масса 22 самцов 602–848 г (в среднем 715 г), 22 самок 929–1265 г (в среднем 1098 г). Окраска схожа с A. g. schvedowi, но темнее, с более густыми полосами снизу.
Распространение и места обитания
Евразийский тетеревятник распространён в Евразии. Встречается почти по всей Европе, кроме Ирландии и Исландии. В Западной Европе (например, Великобритания, Испания, Франция) распространение пятнистое, но в остальной части континента — сплошное. В Евразии ареал охватывает почти всю Россию, кроме тундры, до западных пределов Сибири вплоть до Анадыря и Камчатки. В Восточном полушарии южная граница ареала проходит через северо-запад Марокко, Корсику, Сардинию, «носок» Италии, южную Грецию, Турцию, Кавказ, Синьцзянь (Тянь-Шань), части Тибета и Гималаи (Индия, Непал), западный Китай и Японию. Зимой может встречаться на юге до Таифа (Саудовская Аравия) и, возможно, Тонкина (Вьетнам).
Залётные особи отмечены на Аляске (США), Ньюфаундленде (Канада), Ирландии, в Северной Африке (центральное Марокко, север Алжира, Тунис, Ливия, Египет), на Аравийском полуострове (Израиль, Иордания, Саудовская Аравия), в юго-западной Азии (южный Иран, Пакистан), западной Индии (Гуджарат), на островах Идзу (Япония) и Командорских островах.
Тетеревятник встречается как в лиственных, так и в хвойных лесах. Хотя в разных регионах может проявлять предпочтения к определённым породам деревьев, в целом не имеет выраженных предпочтений между лиственными и хвойными деревьями. В отличие от американского тетеревятника, может жить в урбанизированных мозаиках небольших лесов, лесополос и рощ, а также использовать отдельные деревья в центральных частях городов Евразии, особенно в Центральной Европе. Несмотря на большую осторожность по отношению к человеку, чем у ястреба-перепелятника, тетеревятник известен как обитатель густых лесов крупных городов Центральной Европы, таких как Берлин и Гамбург; это относительно новое явление, возникшее в XX веке.
Тетеревятник может встречаться на любой высоте, но в последнее время чаще встречается на больших высотах из-за нехватки обширных лесов в низинах. Может жить до верхней границы леса, обычно не выше 3000 м над уровнем моря. Северная граница ареала также совпадает с границей леса, где может адаптироваться к карликовым лесам, часто вдоль речных долин тундры. В зимние месяцы северные или горные популяции спускаются в более тёплые леса на меньших высотах, часто оставаясь незаметными, кроме периода миграции. Большинство особей остаются оседлыми круглый год.
Описание
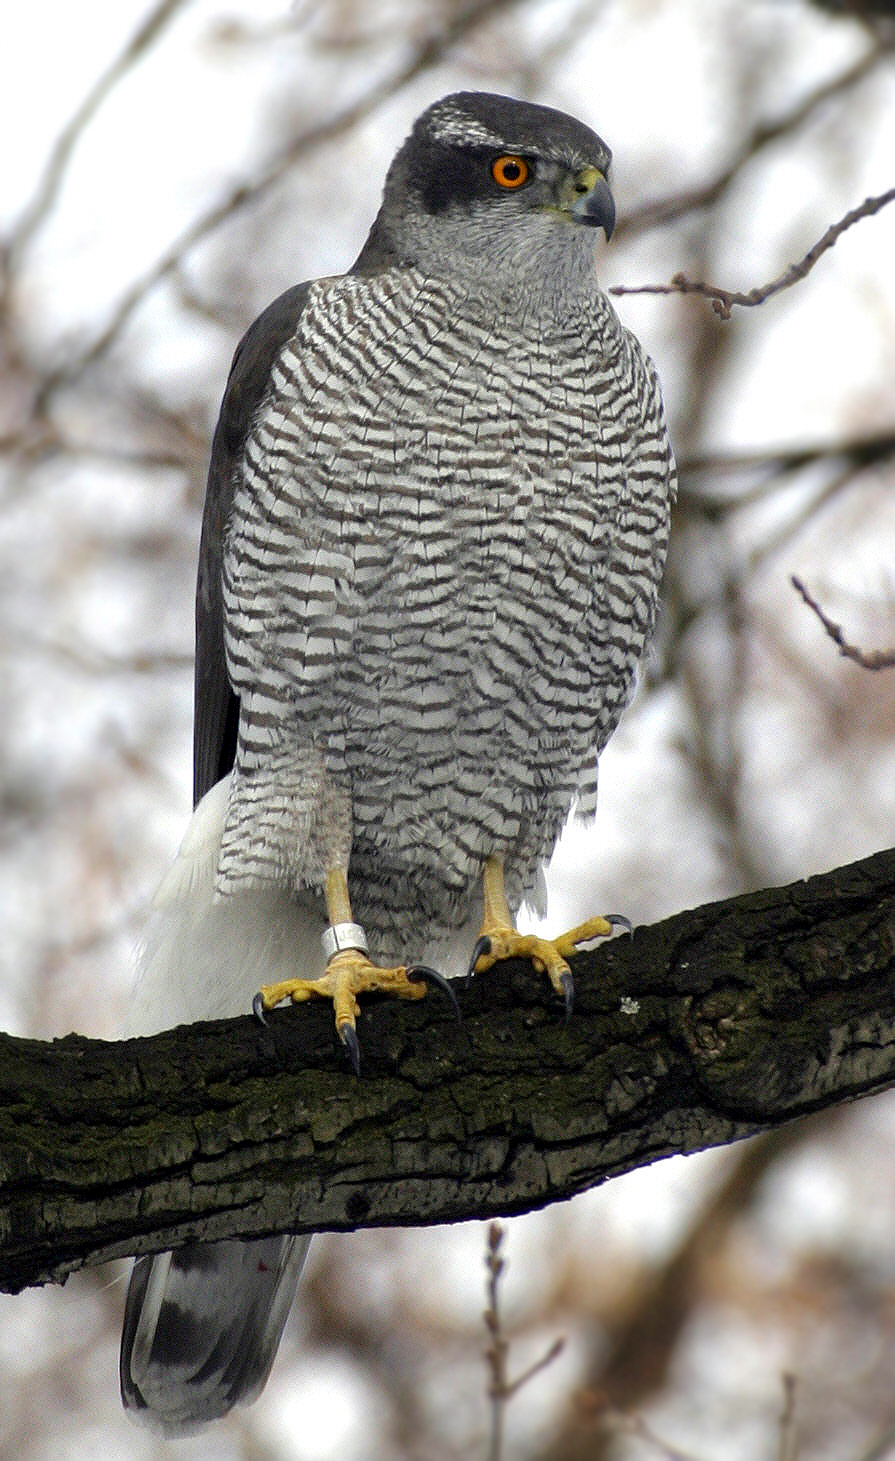
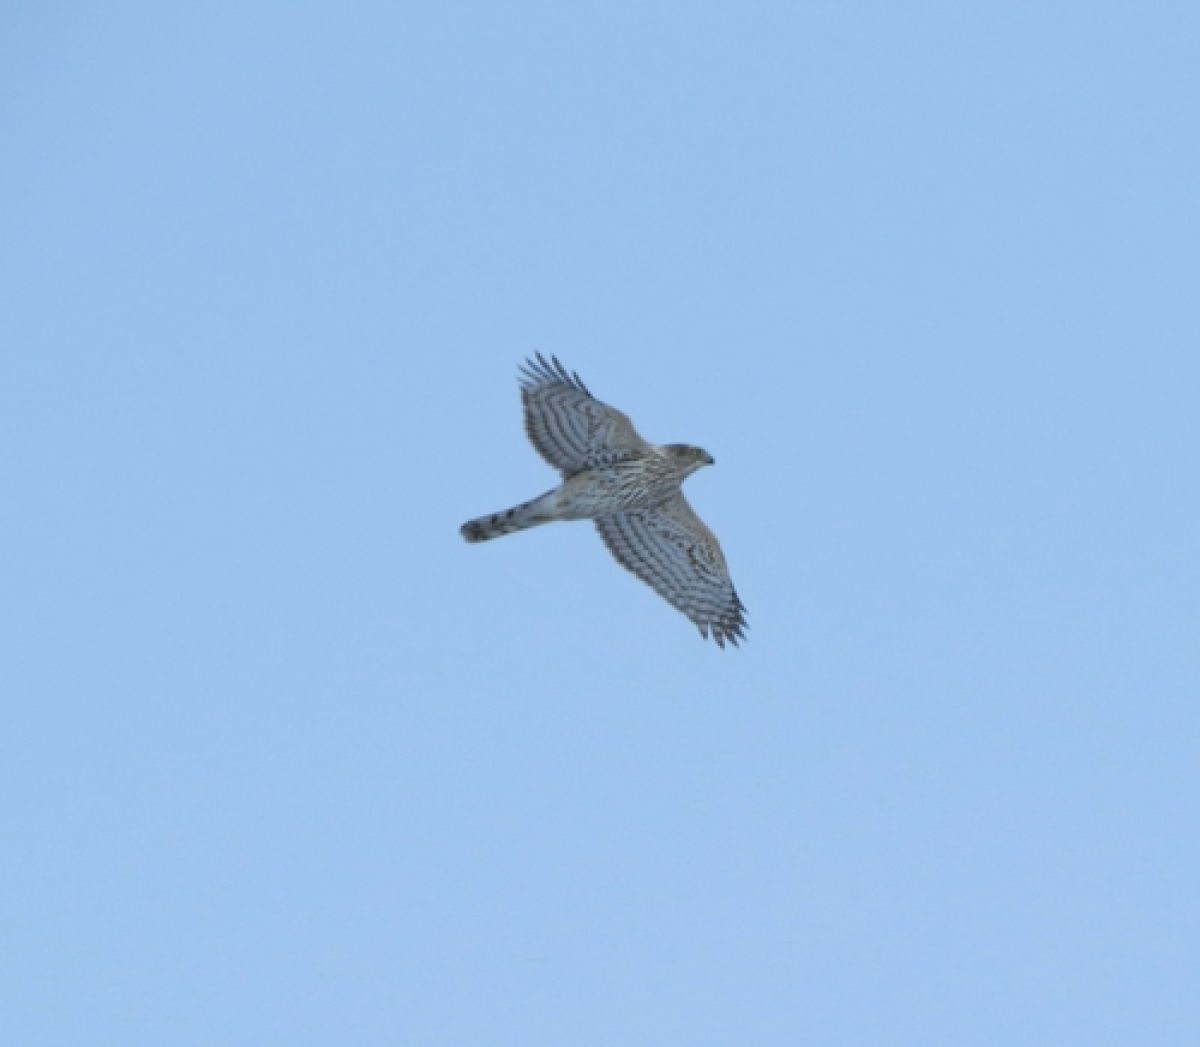
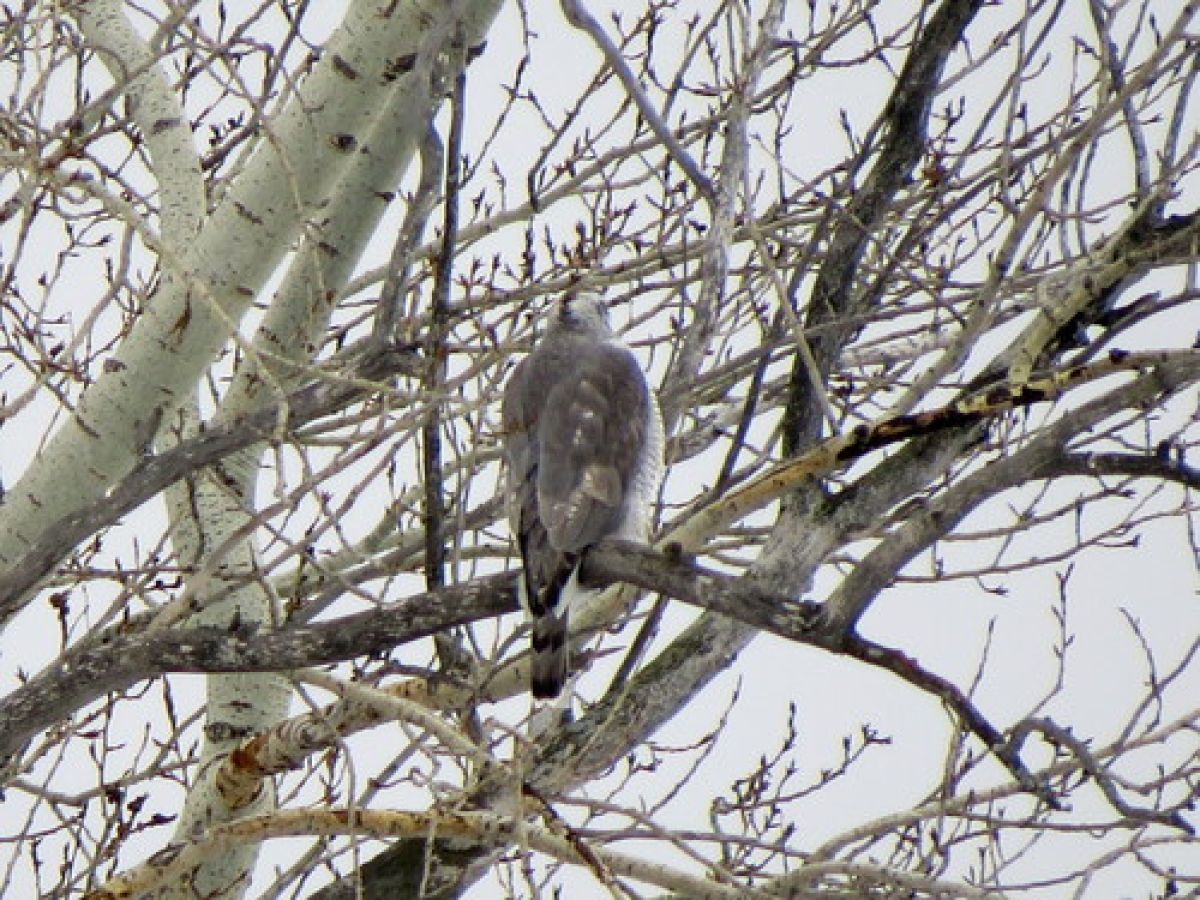
Евразийский тетеревятник имеет относительно короткие широкие крылья и длинный хвост, что типично для рода Astur и характерно для хищников, обитающих в лесах. Для Astur у него относительно крупный клюв, длинные крылья, короткий хвост, крепкие и короткие ноги и особенно толстые пальцы. В большинстве ареала окраска сверху голубовато-серая или буро-серая с тёмными полосами или штрихами, снизу — серая или белая с тёмными полосами; азиатские подвиды варьируют от почти полностью белых до почти чёрных сверху. Окраска варьирует клинально: северные особи светлее, южные темнее, но встречаются и тёмные на севере, и светлые на юге. С возрастом птицы могут светлеть. Оперение более вариабельно, чем у ястреба-перепелятника (Accipiter nisus), вероятно, из-за большей генетической изменчивости. Молодые особи сверху бурые, снизу — от почти белых до почти полностью покрытых широкими тёмно-коричневыми полосами. У взрослых и молодых хвост с 3–5 тёмными полосами. У взрослых всегда есть белая бровь, шире у северных особей. В Европе и Азии у молодых глаза светло-жёлтые, у взрослых — оранжевые, реже ярко-жёлтые или охристые. Линька начинается с конца марта по конец мая, самец линяет позже и быстрее самки. Линька длится 4–6 месяцев, сначала меняются маховые, затем рулевые, последними — контурные и покровные перья, которые могут не смениться полностью до октября.
По размерам крыльев и массе тела тетеревятник Хенста (Astur henstii) и тетеревятник Мейера (Astur meyerianus) перекрываются с этим видом, но евразийский тетеревятник в среднем крупнейший представитель рода Astur. Как и все Astur, вид выраженно половой диморфизм: самки значительно крупнее самцов, особенно в Евразии. Линейно самцы в среднем на 13% меньше самок, но разница может достигать 28%. Самцы длиной 46–63 см, размах крыльев 89–122 см. Самки крупнее: длина 58–69 см, размах крыльев 108–127 см. Средняя масса самцов около 762 г (диапазон 357–1200 г), самок — 1150 г (диапазон 758–2200 г). Длина крыла у самцов 286–354 мм, у самок 324–390 мм. Длина хвоста 200–295 мм, клюва 20–26,3 мм, цевки 68–90 мм.
Голос
Тетеревятники обычно подают голос только в брачный период или во время гнездования. Взрослые издают повторяющиеся звуки, скорость и громкость которых зависят от ситуации. При крике с присады птица часто медленно поворачивает голову из стороны в сторону, создавая эффект «бродячего» звука. Самец издаёт быстрый высокий «кью-кью-кью» при доставке пищи или хриплый «гук» или «чуп» при встрече с самкой. Последний звук напоминает щёлканье языком, издаётся при широко открытом клюве, с поднятой и вытянутой вперёд головой, повторяется с интервалом 5 секунд. В исследовании во Франции пик вокализации приходится на конец марта — апрель, может начинаться за 45 минут до рассвета, в первые три часа после рассвета крики вдвое чаще, чем в остальное время дня. Иногда охотящиеся тетеревятники издают пронзительные крики при преследовании добычи, особенно если погоня затянулась.
Примечания
Ссылки
- Northern goshawk species account — Cornell Lab of Ornithology
- Возрастные и половые различия (PDF; 5,4 МБ), Javier Blasco-Zumeta & Gerd-Michael Heinze Архивировано 16 июля 2015 года.
- Перья ястреба-тетеревятника (Accipiter gentilis) Архивировано 17 мая 2014 года.
Изображения
Фото из наблюдений
Другие изображения